1. Introducción
Los recursos hidrobiológicos desempeñan un papel esencial en la seguridad alimentaria y nutricional a nivel mundial, al constituir una fuente relevante de proteínas de alto valor biológico, lípidos, minerales y otros nutrientes esenciales. A nivel global, los productos pesqueros y acuícolas representan una fracción significativa del suministro de proteína animal, contribuyendo al desarrollo socioeconómico y a la mejora del estado nutricional de numerosas poblaciones (Byrd et al., 2021; FAO, 2025). La calidad nutri-cional del pescado se caracteriza por su elevada digestibilidad proteica y por la presencia de ácidos grasos poliinsaturados de cadena larga, particu-larmente omega-3, asociados con beneficios cardiovasculares y metabólicos (Ahmed et al., 2020; Ahmed et al., 2022; Durmuş, 2019).
No obstante, la composición nutricional de los recursos hidrobiológicos presenta una variabilidad considerable entre especies, la cual depende de factores como el origen, la familia taxonómica, el hábitat, la fisiología y el sistema de producción (Barriga et al., 2012; INS, 2017). Las diferencias ecológicas y metabólicas, tales como el nivel de actividad natatoria o la disponibilidad alimentaria en el entorno natural, influyen directamente en la proporción de agua, proteína y lípidos presentes en la fracción comestible. En este sentido, las especies pelágicas suelen presentar mayor desarrollo muscular y, en algunos casos, mayores reservas lipídicas, mientras que moluscos y crustáceos bentónicos muestran perfiles composicionales distintos (Valenzuela et al., 2011; Zlatanos et al., 2009).
Desde una perspectiva nutricional, el contenido lipídico constituye uno de los principales criterios de diferenciación funcional entre especies. Tradicionalmente, los peces se clasifican en magros y grasos según su concentración de lípidos, lo que determina su densidad energética y su aporte potencial de ácidos grasos esenciales (Durmuş, 2019; FAO, 2025). Las variaciones en proteína y grasa no solo tienen implicancias dietéticas, sino también tecnológicas, ya que influyen en la estabilidad oxidativa, la vida útil y el comportamiento durante el procesamiento (Weber et al., 2008; Abraha et al., 2018; Callet et al., 2017).
A pesar de la relevancia nutricional de estos recursos, gran parte de la literatura se ha centrado en la caracterización individual de especies específicas, sin integrar comparaciones sistema-ticas entre grupos taxonómicos bajo un mismo diseño metodológico. El empleo de herramientas estadísticas multivariadas, como el análisis de componentes principales (PCA) y el análisis discriminante lineal (LDA), permite identificar patrones globales de variabilidad y establecer clasificaciones nutricionales más robustas (Jolliffe & Cadima, 2016; Rencher, 2002). Estas metodologías han sido utilizadas para discriminar especies y productos alimentarios en función de su perfil composicional (Egerton et al., 2020; De Graeve et al., 2022; Silva et al., 2020).
En el contexto peruano, caracterizado por una amplia biodiversidad marina y una creciente producción acuícola, resulta pertinente evaluar comparativamente especies representativas de distintos hábitats y grupos biológicos. La integración de análisis univariado y multivariado en el estudio de la composición proximal permite comprender de manera más integral la variabilidad nutricional de estos recursos y su potencial contribución a la alimentación humana (INS, 2017; Rodríguez et al., 2017).
En este marco, el presente estudio tuvo como objetivo evaluar comparativamente la compo-sición proximal de ocho especies hidrobiológicas comerciales del Perú y establecer su diferen-ciación nutricional mediante análisis estadísticos univariados y multivariados, aportando evidencia científica sobre la biodiversidad composicional de especies de consumo habitual.
2. Metodología
2.1. Diseño del estudio
Se realizó un estudio descriptivo comparativo orientado a evaluar la composición proximal de ocho especies hidrobiológicas comerciales repre-sentativas del consumo humano en el Perú. El análisis se centró en la fracción comestible de cada especie, con el propósito de estimar su valor nutricional en condiciones habituales de comer-cialización y consumo, siguiendo criterios utiliza-dos en estudios previos de caracterización composicional de recursos pesqueros (INS, 2017; Byrd et al., 2021).
2.2. Adquisición de muestras
Las especies evaluadas fueron: merluza (Merluccius merluccius), calamar gigante (Dosidicus gigas), langostino (Penaeus vannamei), concha de abanico (Argopecten purpuratus), caballa (Scomber scombrus), trucha (Oncorhynchus mykiss), perico (Coryphaena hippurus) y bonito (Sarda chiliensis). Estas especies representan distintos hábitats (pelágico, demersal, bentónico y acuícola) y grupos taxonó-micos de relevancia comercial.
Las especies provenientes de pesca extractiva fueron adquiridas en mercados mayoristas locales bajo condiciones comerciales habituales, mien-tras que las especies de cultivo procedieron de centros de producción autorizados. Se seleccio-naron ejemplares frescos y de tamaño comercial, siguiendo criterios de calidad comúnmente empleados en estudios de composición nutricional (INS, 2017; Barriga et al., 2012).
Las muestras fueron transportadas al laboratorio en contenedores isotérmicos con hielo, mante-niendo la cadena de frío hasta su procesamiento. A su recepción, se realizó inspección órgano-léptica para verificar frescura e integridad, así como confirmación taxonómica de las especies, conforme a registros técnicos nacionales (INS, 2017).
2.3. Preparación y homogeneización de las muestras
La fracción comestible fue obtenida mediante procedimientos estandarizados. En peces, se extrajo el filete del músculo dorsal y ventral, exclu-yendo cabeza, vísceras, piel y espinas. En el caso de moluscos y crustáceos, se utilizaron exclusi-vamente los tejidos blandos comestibles, descar-tando conchas y exoesqueletos. Estos procedi-mientos son consistentes con metodologías empleadas en estudios de caracterización nutricional de productos hidrobiológicos (Byrd et al., 2021; Zlatanos et al., 2009).
Las muestras fueron lavadas con agua potable para eliminar residuos superficiales, escurridas y trituradas hasta obtener una masa homogénea. Posteriormente, se fraccionaron en porciones representativas y se almacenaron en recipientes herméticos a 4 °C hasta su análisis químico.
Para cada especie se analizaron tres lotes inde-pendientes adquiridos en puntos de comercia-lización local, cada uno conformado por individuos de tamaño comercial homogéneo. Las determina-ciones de composición proximal se realizaron por triplicado para cada lote, expresándose los resultados como media ± desviación estándar. El tamaño muestral se consideró adecuado para estudios comparativos de composición proximal en especies hidrobiológicas, siguiendo criterios empleados en investigaciones similares (Ahmed et al., 2022; Egerton et al., 2020). Asimismo, el número de observaciones fue suficiente para la aplicación de técnicas multivariadas exploratorias, de acuerdo con recomendaciones metodológicas en análisis de componentes principales (Jolliffe & Cadima, 2016).
2.4. Análisis químico proximal
El análisis químico proximal se realizó por triplicado para cada especie. El contenido de humedad se determinó mediante secado en estufa hasta peso constante según el método AOAC 934.01. El contenido de proteína se cuantificó mediante el método Kjeldahl (factor de conversión N × 6,25) conforme al método AOAC 954.05. Los lípidos se determinaron por extrac-ción Soxhlet siguiendo el método AOAC 920.39, y las cenizas se cuantificaron por incineración en mufla según el método AOAC 942.05 (AOAC, 2016).
El contenido de carbohidratos se estimó por dife-rencia, restando de 100% la suma de humedad, proteínas, lípidos y cenizas, procedimiento am-pliamente utilizado en estudios de composición de alimentos en el Perú (Collazos, 1993; INS, 2017).
2.5. Análisis estadístico
Los resultados se expresaron como media ± desviación estándar (DE) de tres determinaciones independientes. Se verificaron los supuestos de normalidad mediante la prueba de Shapiro-Wilk y de homogeneidad de varianzas mediante la prueba de Levene. Para evaluar diferencias significativas entre especies en cada componente proximal, se aplicó análisis de varianza (ANOVA) de una vía, considerando la especie como factor fijo. Cuando se detectaron diferencias significa-tivas (p < 0,05), se utilizó la prueba de diferencia mínima significativa (LSD) para comparación múltiple de medias.
Con el fin de identificar patrones globales de variabilidad composicional, se realizó un análisis de componentes principales (PCA), técnica am-pliamente utilizada para reducir dimensionalidad e interpretar asociaciones entre variables (Jolliffe & Cadima, 2016). Asimismo, se aplicó análisis discriminante lineal (LDA) para determinar las variables con mayor capacidad de clasificación entre especies, siguiendo los fundamentos teóricos descritos por Rencher (2002). Este enfoque multivariado ha sido empleado en estudios de diferenciación composicional de especies y productos alimentarios (Egerton et al., 2020; De Graeve et al., 2022; Silva et al., 2020).
El procesamiento estadístico se realizó utilizando el software Statgraphics Centurion, versión XVI (Statgraphics Technologies Inc., EE. UU.), considerando un nivel de significancia de α = 0,05.
3. Resultados y discusión
3.1. Variabilidad de la composición proximal entre especies
Los valores de composición proximal de las ocho especies hidrobiológicas evaluadas se presentan en la Tabla 1. Se observaron diferencias estadís-ticamente significativas (p < 0,05) en todos los componentes analizados.
La humedad fue el componente predominante en todas las especies, con valores comprendidos entre 69,85% (caballa) y 81,15% (calamar gigante) (Tabla 1). Este comportamiento es característico de productos hidrobiológicos fres-cos y coincide con lo reportado en estudios previos (Byrd et al., 2021). Se evidenció además una relación inversa entre humedad y contenido lipídico, particularmente en caballa y trucha, patrón previamente descrito en especies marinas (Zlatanos et al., 2009).
El contenido proteico osciló entre 15,83% (cala-mar gigante) y 22,14% (bonito), como se muestra en la Tabla 1. Las especies pelágicas (bonito, caballa y perico) presentaron mayores concentra-ciones proteicas, lo que puede asociarse con su mayor desarrollo muscular vinculado a actividad natatoria constante (Ahmed et al., 2022; Egerton et al., 2020).
La mayor variabilidad se observó en el contenido lipídico (Tabla 1), con un rango de 0,54% (concha de abanico) a 6,12% (caballa). Esta diferencia permitió establecer una clasificación funcional entre especies magras (<2%) y grasas (>4%). Desde el punto de vista nutricional, esta diferen-ciación es relevante debido a la relación entre contenido lipídico y aporte potencial de ácidos grasos omega-3 (Durmuş, 2019; FAO, 2025).
La variabilidad composicional observada en las especies evaluadas es consistente con estudios recientes que han reportado diferencias significativas en el perfil proximal de recursos acuáticos según hábitat, dieta y estado fisiológico (Al Solami & Korish, 2024; Lal & Naeem, 2021). Asimismo, investigaciones en especies latinoa-mericanas han evidenciado que factores ambien-tales y prácticas de manejo pueden influir en el contenido lipídico y proteico, generando patrones comparables a los observados en el presente estudio (Centeno-Chaves et al., 2025; Figueroa-Muñoz et al., 2020).
Los valores de cenizas y carbohidratos (calcula-dos por diferencia) mostraron menor variabilidad (Tabla 1), comportándose dentro de los rangos reportados para productos hidrobiológicos comer-ciales (Collazos, 1993; INS, 2017; Barriga et al., 2012).
3.2. Análisis multivariado y diferenciación nutricional
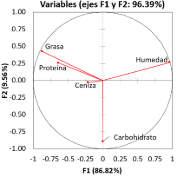
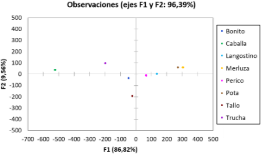
Con el fin de integrar simultáneamente los componentes proximales y establecer patrones globales de diferenciación entre especies, se aplicaron técnicas multivariadas que permitieron sintetizar la variabilidad composicional observada en la Tabla 1. La aplicación de herramientas multivariadas para discriminar especies según su composición proximal ha sido ampliamente utilizada en estudios recientes de autenticación y diferenciación de alimentos, donde el análisis de componentes principales y métodos discrimi-nantes permiten identificar variables dominantes en la variabilidad composicional (Oroian et al., 2025; Fujii, 2016). En este contexto, la identificación del contenido lipídico como eje principal de diferenciación coincide con enfoques estadísticos empleados en matrices alimentarias complejas.
3.2.3. Asociación entre especies y componentes proximales
El análisis de correspondencia simple, presentado en la Figura 3 permitió evaluar la asociación directa entre especies y componentes proximales. En este análisis se observa que los peces óseos tienden a asociarse con mayores contenidos de proteína y lípidos, mientras que moluscos y crustáceos se relacionan principalmente con mayor humedad y menor fracción lipídica.
Este patrón refleja diferencias metabólicas y estructurales propias de cada grupo biológico. Las especies pelágicas, caracterizadas por mayor actividad natatoria, presentan mayor desarrollo muscular y, en algunos casos, mayor acumulación energética, mientras que organismos bentónicos muestran perfiles consistentemente magros (Zlatanos et al., 2009; Barriga et al., 2012).
La Figura 3 complementa los resultados del PCA al mostrar gráficamente la contribución relativa de cada componente en la agrupación observada.
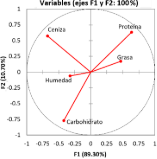
Figura 3. Análisis de correspondencia simple entre especies y componentes proximales. Los peces óseos (como la caballa) muestran una mayor concentración de grasa y proteínas, mientras que los crustáceos y moluscos (como el calamar gigante) se agrupan con valores más bajos en estos componentes.
3.2.4. Diferenciación composicional según familia taxonómica
La diferenciación según familia taxonómica se presenta en la Figura 4, donde se observa que las especies pertenecientes a peces pelágicos presentan mayor variabilidad en el contenido lipídico y proteico, mientras que moluscos y crustáceos mantienen perfiles más homogéneos y asociados a mayor humedad.
Esta diferenciación confirma que los patrones composicionales no solo ocurren a nivel individual de especie, sino que también responden a características estructurales y ecológicas propias de cada grupo taxonómico. La coherencia entre las Figuras 1–4 demuestra que la grasa actúa como variable dominante en la clasificación nutricional global.
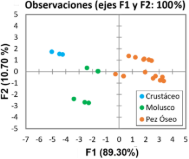
Figura 4. Análisis de correspondencia de los componentes proximales según familia. Destaca las diferencias en el contenido de grasa y proteínas entre los peces pelágicos y los moluscos y crustáceos.
Las cargas factoriales y coeficientes discrimi-nantes confirmaron que el contenido lipídico presentó la mayor contribución estructural en el primer componente y en la función discriminante principal (datos no mostrados).
3.3. Contenido lipídico e implicancias nutricio-nales y tecnológicas
El contenido lipídico emergió como la variable con mayor variabilidad entre especies (0,54–6,12%), tal como se observa en la Tabla 1 y se confirma en los análisis multivariados (Figuras 1–4). Esta amplitud permitió establecer una diferenciación funcional entre especies magras (<2%) y especies grasas (>4%), clasificación que constituye un criterio ampliamente utilizado en nutrición para caracterizar el aporte energético de los productos pesqueros (Durmuş, 2019; FAO, 2025).
Desde una perspectiva nutricional, las especies con mayor contenido graso, como caballa y trucha, presentan mayor densidad energética y potencial aporte de ácidos grasos poliinsaturados de cadena larga, particularmente omega-3, asociados con efectos cardioprotectores y antiinflamatorios (Ahmed et al., 2020; Ahmed et al., 2022; Durmuş, 2019). Por el contrario, especies magras como calamar gigante, concha de abanico y langostino aportan proteína de alta calidad con menor carga calórica, lo que las convierte en alternativas adecuadas en dietas hipocalóricas o en programas de control metabólico.
La relación inversa observada entre humedad y lípidos, evidenciada en la Tabla 1, es consistente con patrones descritos en especies marinas y refleja mecanismos fisiológicos de balance hídrico y energético (Zlatanos et al., 2009; Barriga et al., 2012). Las especies con mayor acumulación energética tienden a presentar menor contenido de agua, lo que influye tanto en su valor nutricional como en su comportamiento durante el procesamiento.
Desde el punto de vista tecnológico, el contenido lipídico constituye un factor determinante en la estabilidad oxidativa, vida útil y calidad sensorial del producto. Procesos térmicos intensos, como fritura o secado, pueden favorecer la oxidación de lípidos y degradación de compuestos sensibles, mientras que métodos como cocción al vapor o procesamiento controlado preservan mejor el perfil nutricional (Weber et al., 2008; Abraha et al., 2018; Callet et al., 2017). Asimismo, especies con mayor contenido graso pueden presentar ventajas en la elaboración de conservas, productos ahumados o pastas reestructuradas, como se ha reportado en desarrollos tecnológicos nacionales (Porturas et al., 2019; Porturas Olaechea et al., 2023). Estudios previos han destacado que el contenido lipídico no solo determina el valor energético del alimento, sino también su susceptibilidad a procesos oxidativos durante almacenamiento y procesamiento térmico (Boițeanu et al., 2014). En este sentido, la diferenciación observada entre especies magras y grasas adquiere relevancia tecnológica, ya que influye directamente en estrategias de conservación, estabilidad sensorial y vida útil del producto final.
En conjunto, el contenido lipídico no solo explica la mayor parte de la variabilidad composicional observada en el análisis multivariado, sino que constituye el eje central de diferenciación nutricional y tecnológica entre especies. Su consideración resulta fundamental tanto en la planificación dietaria como en la selección estratégica de materias primas para la industria alimentaria.
La aplicación de herramientas multivariadas para discriminar especies según su composición proximal ha sido ampliamente utilizada en estudios recientes de autenticación y diferenciación de alimentos, donde el análisis de componentes principales y métodos discrimi-nantes permiten identificar variables dominantes en la variabilidad composicional (Oroian et al., 2025; Fujii, 2016). En este contexto, la identificación del contenido lipídico como eje principal de diferenciación coincide con enfoques estadísticos empleados en matrices alimentarias complejas.
4. Conclusiones
El presente estudio demostró que la composición proximal de ocho especies hidrobiológicas comerciales del Perú presenta diferencias significativas asociadas a su clasificación biológica y características metabólicas. Entre los componentes analizados, el contenido lipídico emergió como el principal eje estructural de diferenciación nutricional, explicando la mayor parte de la variabilidad observada en los análisis multivariados.
La aplicación integrada de técnicas univariadas y multivariadas (PCA y LDA) permitió establecer una clasificación funcional objetiva entre especies magras y grasas, evidenciando patrones composicionales consistentes tanto a nivel de especie como de familia taxonómica. Este enfoque estadístico proporcionó una visión más robusta de la biodiversidad nutricional que la evaluación descriptiva tradicional.
Desde una perspectiva nutricional, la diferenciación en el contenido lipídico tiene implicancias directas en la densidad energética y en el potencial aporte de ácidos grasos esenciales, elementos clave en la prevención de enfermedades crónicas no transmisibles. Las especies con mayor contenido graso pueden contribuir significativamente al aporte de omega-3, mientras que las especies magras constituyen alternativas proteicas de alta calidad con menor carga calórica.
Asimismo, el perfil lipídico influye en el comportamiento tecnológico de las materias primas, afectando estabilidad oxidativa, vida útil y aptitud para distintos procesos de transformación. Por tanto, la caracterización comparativa realizada aporta información estratégica tanto para la nutrición pública como para la selección y valorización de recursos hidrobiológicos.
El estudio se basa en composición proximal; futuras investigaciones podrían incorporar perfil detallado de ácidos grasos y micronutrientes específicos para ampliar la interpretación nutricional. En conjunto, los resultados contribuyen al conocimiento de la variabilidad composicional de especies de consumo habitual en el Perú y proporcionan una base científica para el desarrollo de estrategias alimentarias orienta-
das a promover dietas saludables basadas en recursos acuáticos.
Agradecimientos
Los autores agradecen al Departamento de Acuicultura e Industrias Pesqueras de la Facultad de Ingeniería Pesquera de la Universidad Nacional Agraria La Molina por el apoyo en el uso de las instalaciones y equipos para realizar el estudio de investigación.
Referencias bibliográficas
Abraha, B., Admassu, H., Mahmud, A., Tsighe, N., Shui, X. W., & Fang, Y. (2018). Effect of processing methods on nutritional and physico-chemical composition of fish: a review. MOJ Food Processing & Technology, 6(4), 376-382, DOI: 10.15406/mojfpt.2018.06.00191
Ahmed, I., Jan, K., Fatma, S., & Dawood, M. A. (2022). Muscle proximate composition of various food fish species and their nutritional significance: A review. Journal of Animal Physiology and Animal Nutrition, 106(3), 690-719. https://doi.org/10.1111/jpn.13711
Ahmed, M., Liaquat, M., Shah, A. S., et al. (2020). Proximate Composition and Fatty Acid Profiles of Selected Fish Species from Pakistan. August https://doi.org/10.36899/JAPS.2020.4.0102
Al Solami, L., & Korish, M. (2024). Proximate composition, fatty acid characteristics, amino acid profile and mineral content of fish Acanthurus sohal. Heliyon, 10(16). https://doi.org/10.1016/j.heliyon.2024.e36474
AOAC. (2016). Official methods of analysis (20th ed.). Association of Official Analytical Chemists.
Barriga, M., Salas, A., Aranda, D., Castro, C., Albrecht, M., Solari, A., & Arpi, E. (2012). Información nutricional sobre algunas especies comerciales del mar peruano. Boletín de Investigación del Instituto Tecnológico Pesquero del Perú, 10, 1–32. https://hdl.handle.net/20.500.14523/37
Boițeanu, C. N., Karl, M. M., Karl, H., Meyer, C., & Savu, C. (2014). Proximate composition, microbiological quality and sensory attributes of mahi-mahi (Coryphaena hippurus). Bulletin of University of Agricultural Sciences and Veterinary Medicine Cluj-Napoca. Food Science and Technology, 71(2), 89–95. https://doi.org/10.15835/buasvmen-fst:10540
Byrd, K. A., Thilsted, S. H., & Fiorella, K. J. (2021). Fish nutrient composition: a review of global data from poorly assessed inland and marine species. Public health nutrition, 24(3), 476-486. https://doi.org/10.1017/S1368980020003857
Callet, A., Hurtado, M., & Crispín, F. (2017). Evaluación nutricional de productos pesqueros procesados. Revista Peruana de Agroindustria, 7(1), 45–54.
Centeno-Chaves, A., Marrari, M., Arias-Zumbado, F., García-Rojas, A., Mug-Villanueva, M. (2025). Composition of pelagic fish in commercial landings of the longline fishery in the Costa Rica Pacific during 2015-2021. Frontiers in Marine Science. https://doi.org/10.3389/fmars.2024.1490883
Collazos, C. (1993). La composición de alimentos de mayor consumo en el Perú. Instituto Nacional de Nutrición. https://doi.org/10.15381/anales.v40i1.10737
De Graeve, M., Birse, N., Hong, Y., Elliott, C., Hemeryck, L., & Vanhaecke, L. (2022). Multivariate versus machine learning-based classification of rapid evaporative Ionisation mass spectrometry spectra towards industry-based large-scale fish speciation. Food Chemistry, 404 Pt B, 134632. https://doi.org/10.1016/j.foodchem.2022.134632
Durmuş, M. (2019). Fish oil for human health: omega-3 fatty acid profiles of marine seafood species. Food Science and Technology, 39, 454-461. https://doi.org/10.1590/fst.21318
Egerton, S., Mannion, D., Culloty, S., et al. (2020). The proximate composition of three marine pelagic fish: blue whiting (Micromesistius poutassou), boarfish (Capros aper), and Atlantic herring (Clupea harengus). Irish Journal of Agricultural and Food Research. 59(1), 185–200. https://www.jstor.org/stable/27041765.
FAO (2025) Fishery and Aquaculture Statistics – Yearbook 2022. FAO Yearbook of Fishery and Aquaculture Statistics. Rome. https://doi.org/10.4060/cd4312en
Figueroa-Muñoz, G., Ríos-Escalante, P., Dantagnan, P., et al. (2020). Proximal composition and fatty acid profile of Hemigrapsus crenulatus. Brazilian Journal of Biology https://doi.org/10.1590/1519-6984.231834
Fujii, T. (2016). Potential influence of offshore oil and gas platforms on the feeding ecology of fish assemblages in the North Sea. Marine Ecology Progress Series, 542, 167-186. https://doi.org/10.3354/meps11534
IMARPE. (1970). Informe técnico sobre especies hidrobiológicas de importancia comercial. Instituto del Mar del Perú.
INS. (2017). Tablas peruanas de composición de alimentos (8.ª ed.). Instituto Nacional de Salud. https://www.gob.pe/institucion/ins/informes-publicaciones/4231115-tablas-peruanas-de-composicion-de-alimentos-tpca
Jolliffe, I. T., & Cadima, J. (2016). Principal component analysis: A review and recent developments. Philosophical Transactions of the Royal Society A: Mathematical, Physical and Engineering Sciences, 374(2065), 20150202. https://doi.org/10.1098/rsta.2015.0202
Lal, V., & Naeem, M. (2021). Proximate Composition Analysis of Marine Fish, Terapon jarbua, from Pakistan. Sarhad Journal of Agriculture. http://dx.doi.org/10.17582/journal.sja/2021/37.1.290.295
Omote, R., & Molleda, A. (2018). Elaboración y caracterización de un producto preformado congelado a base de músculo de bonito (Sarda chiliensis). Anales Científicos, 79(2), 526–533. https://doi.org/10.21704/ac.v79i2.1234
Oroian, I., Bulete, B. I., Matei, E., Odagiu, A., Burduhos, P., Oroian, C. F., Ștefan, O. D., & Bordea, D. (2025). Assessment of Heavy Metal Contamination, Bioaccumulation, and Nutritional Quality in Fish from the Babina–Cernovca Romanian Sector of the Danube River. Foods. https://doi.org/10.3390/foods14193419
Porturas Olaechea, R., Ramírez Palomino, D., Crispín Sánchez, F., Vásquez Quispesivana, W., Sánchez Amado, D., & Rivera Rojas, H. (2023). Elaboración de conservas de pasta untable ahumada a partir de recortes de filetes de trucha Oncorhynchus mykiss. Agroindustrial Science, 13(2), 83-91. https://doi.org/10.17268/agroind.sci.2023.02.04
Porturas, R., Hurtado, M., & Crispín, F. (2019). Elaboración de pasta untable a partir de recortes de pota (Dosidicus gigas) en envase ¼ club. Agroindustrial Science, 9(2), 145-153. https://doi.org/10.17268/agroind.sci.2019.02.07
Rencher, A. C. (2002). Methods of Multivariate Analysis (2nd ed.). Wiley-Interscience.
Rodríguez, L., Cervantes, E., & Ortiz, R. (2017). Malnutrition and fish consumption: Role of fish in a balanced diet. Nutrients, 9(6), 562. https://doi.org/10.3390/nu9060562
Silva, E. F. R., Santos, B., Brandão, G., Silva, M., Erik G. P. Silva, W. P. C. Santos, & Santos, A. M. P. (2020). Screening of minerals, proximate composition, and physico-chemical characteristics in the discrimination of Oiti. Brazilian Journal of Development, 6(4), 21576-21597. https://doi.org/10.34117/bjdv6n4-360
Valenzuela, A., Yáñez, C. G., & Golusda, C. (2011). Argopecten purpuratus, un alimento de alto valor nutricional. Revista Chilena de Nutrición, 38(4), 485–493. https://doi.org/10.4067/S0717-75182011000400010
Weber, J., Bochi, V. C., Ribeiro, C. P., Victório, A. D. M., & Emanuelli, T. (2008). Effect of different cooking methods on the oxidation, proximate and fatty acid composition of silver catfish (Rhamdia quelen) fillets. Food chemistry, 106(1), 140-146. https://doi.org/10.1016/j.foodchem.2007.05.052
Zlatanos, S., Laskaridis, K., & Sagredos, A. (2009). Determination of proximate composition, fatty acid content and amino acid profile of five lesser-common sea organisms from the Mediterranean Sea. International Journal of Food Science and Technology, 44(8), 1590-1594. https://doi.org/10.1111/j.1365-2621.2008.01870.x