Propagación in vitro de genotipos de pitahaya pulpa morada (Selenicereus costaricensis) a partir de semillas y areolas
In vitro propagation of purple-fleshed pitahaya (Selenicereus costaricensis) genotypes from seeds and areoles
Elvis Loor-Marcillo¹; Andreina Armijos-Gaspar¹; Luis Duicela-Guambi¹*;
Veris Saldarriaga-Lucas¹
1 Escuela Superior Politécnica Agropecuaria de Manabí Manuel Félix López. Calceta, cantón Bolívar, Provincia de Manabí, Ecuador.
ORCID de los autores
E. Loor-Marcillo: https://orcid.org/0009-0001-4086-4378 A. Armijos-Gaspar: https://orcid.org/0009-0005-8386-4801
L. Duicela-Guambi: https://orcid.org/0000-0002-9326-8545 V. Saldarriaga-Lucas: https://orcid.org/0000-0002-7706-2520
RESUMEN
La pitahaya de pulpa morada es un cultivo exótico con creciente proyección agroindustrial, donde su propagación convencional está limitada por la variabilidad genética, la disponibilidad restringida de material vegetal y el lento crecimiento del cultivo. El objetivo de esta investigación, realizada en dos fases a nivel del laboratorio, fue desarrollar un método alternativo de propagación in vitro de genotipos de pitahaya de pulpa morada a partir de semillas y areolas, para fomentar su cultivo en la provincia de Manabí. En la fase de multiplicación se realizó dos ensayos en diseños completamente al azar con arreglo factorial de dosis de auxinas y citoquininas, en medio de cultivo Murashige & Skoog. En la fase de enraizamiento de explantes, en los dos ensayos en diseños completos al azar, se probó dosis de auxinas y citoquininas, y dos niveles de carbón activado. La combinación de 0 mg/L de auxinas (AIA) y 2 mg/L de Citoquininas (BAP) fue la mejor dosis de multiplicación tanto para semillas como para areolas. Así también se determinó que una mezcla con 0,50 mg/L de auxinas (ANA) y 0,50 mg/L de Citoquininas (BAP) promueve mejor respuesta en número y longitud de brotes. En el enraizamiento de explantes derivados de semillas y areolas, la mejor respuesta se logró con 0,20 g/L de carbón activado, 0,50 mg/L de auxinas y 0,50 mg/L de citoquininas, con efectos significativos sobre el número y longitud de raíces, así como en el peso fresco, obteniendo plántulas de alto valor nutracéutico.
Palabras clave: cultivo exótico; propagación in vitro; enraizamiento de explantes; plántulas de calidad; valor nutracéutico.
ABSTRACT
Purple-fleshed pitahaya is an exotic crop with growing agro-industrial potential, but its conventional propagation is limited by genetic variability, restricted availability of plant material, and slow crop growth. The objective of this research, conducted in two phases at the laboratory level, was to develop an alternative in vitro propagation method for purple-fleshed pitahaya genotypes from seeds and areoles to promote its cultivation in the province of Manabí. In the multiplication phase, two completely randomized trials with a factorial arrangement of auxin and cytokinin doses were performed in Murashige & Skoog culture medium. In the explant rooting phase, in the two completely randomized trials, auxin and cytokinin doses, as well as two levels of activated charcoal, were tested. The combination of 0 mg/L of auxin (IAA) and 2 mg/L of cytokinin (BAP) proved to be the optimal multiplication dose for both seeds and areoles. It was also determined that a mixture containing 0.50 mg/L of auxins (NAA) and 0.50 mg/L of cytokinins (BAP) promotes a better response in terms of the number and length of shoots. In the rooting of explants derived from seeds and areoles, the best response was achieved with 0.20 g/L of activated charcoal, 0.50 mg/L of auxins, and 0.50 mg/L of cytokinins, with significant effects on the number and length of roots, as well as on fresh weight, resulting in plantlets with high nutraceutical value.
Keywords: exotic crop; in vitro propagation; explant rooting; quality plantlets; nutraceutical value.
1. Introducción
La pitahaya (Hylocereus spp.), conocida como fruta del dragón, es un cactus perenne, perteneciente a la familia de las Cactáceas, del orden Caryophyllales (Bozkurt et al., 2020), que tiene importancia nutricional por su alto contenido de betalainas, compuestos fenólicos y su uso en el campo medicinal e industrial (Chen et al., 2026; Bozkurt et al., 2022). En los últimos años, la pitahaya ha despertado un creciente interés científico por su potencial nutracéutico, su adaptación a ambientes tropicales y las posibilidades de expansión bajo sistemas de producción sostenibles (Trindade et al., 2026; Shah et al., 2023).
Entre las principales especies de pitahaya se encuentran, la pitahaya amarilla (Selenicereus megalanthus), la pitahaya roja (Hylocereus undatus) y la pitahaya pulpa morada (Selenicereus costaricensis). Estas son reproducidas principalmente por semillas y explantes (Mállap et al., 2022; Tineo, 2024). Según Maldonado et al. (2026) y Sudiarta et al. (2021), la pitahaya de pulpa morada contiene antocianinas, pigmentos pertenecientes al grupo de los compuestos fenólicos, responsables de su coloración y parte de su capacidad antioxidante. Esta variedad de pitahaya se cultiva en las zonas tropicales y subtropicales (Verona et al., 2020), como: Filipinas, Malasia, México, Guatemala, Australia, Japón, China, Estados Unidos (Ismail et al., 2022).
En el Ecuador, la producción de la pitahaya de pulpa morada enfrenta limitaciones debido a la falta de genotipos de alta calidad, la no adopción de técnicas avanzadas de propagación y las restricciones propias de los métodos tradicionales. El cambio climático está alterando patrones de temperatura, disponibilidad de agua y calidad de los suelos, por lo tanto, la propagación convencional no alcanza a cubrir la demanda, aunque ha ganado relevancia en los últimos años.
Actualmente, la propagación de la pitahaya de pulpa morada se realiza principalmente a partir de areolas adultas. Estudios recientes demuestran que la respuesta morfogénica, durante el establecimiento y la multiplicación in vitro, depende del tipo y la concentración de los reguladores de crecimiento, especialmente de las citoquininas y auxinas, las cuales influyen en la inducción, proliferación y elongación de brotes (Pech et al., 2026; Reyes et al., 2026).
Los cultivares de esta especie son escasos, lo que limita su expansión. En estas circunstancias, la propagación in vitro ha surgido como alternativa viable para acelerar estos procesos, a partir de areolas y semillas, que comprenden las fases de multiplicación y de enraizamiento. Esta técnica, aunque prometedora, enfrenta desafíos como: las bajas tasas de germinación y de supervivencia, la oxidación de los explantes, las dificultades en la adaptación de las vitroplantas a condiciones naturales y a barreras para la producción masiva y la comercialización a gran escala (Gonzáles., 2020; Tineo., 2024; Ahmed et al., 2026)
La propagación in vitro de pitahaya ofrece ventajas significativas, como mejorar la eficiencia reproductiva y la calidad de las plantas (Oo et al., 2023). Este enfoque permite obtener plántulas con uniformidad genética, excelente calidad sanitaria y fisiológica, en el menor tiempo (Mustafa & Saad, 2020; Bettoni et al., 2024). Es importante alcanzar altas tasas de supervivencia de plántulas de calidad (Kabir et al., 2024; Trivellini et al., 2020).
En estudios recientes, se enfatiza que la propagación in vitro de Selenicereus costaricensis puede optimizarse mediante el ajuste del medio de cultivo y de las concentraciones de reguladores de crecimiento, lo que incrementa la proliferación de brotes, el desarrollo radicular y la supervivencia durante la aclimatación (Ahmed et al., 2026). Sarmiento et al. (2025), informan que alcanzaron una germinación del 85% usando semillas; Carmona et al. (2025), reportan tasas de regeneración de brotes de hasta 82,1% en cultivo in vitro utilizando medios enriquecidos con citoquininas y auxinas.
El objetivo de esta investigación fue desarrollar un método alternativo de propagación in vitro de genotipos de pitahaya de pulpa morada a partir de semillas y areolas, para fomentar su cultivo en la provincia de Manabí.
2. Metodología
Área de estudio y condiciones experimentales
El estudio se realizó en el Laboratorio de Biotecnología de la Escuela Superior Politécnica Agropecuaria de Manabí “Manuel Félix López” (ESPAM MFL), ubicado en la ciudad de Calceta, cantón Bolívar, provincia de Manabí, Ecuador (0°49′09,52″ S; 80°10′52,82″ O; 102 m s. n. m.). Las fases experimentales se realizaron bajo condiciones controladas de cultivo in vitro.
Material vegetal y métodos de propagación
Se utilizó pitahaya de pulpa morada (Selenicereus costaricensis), empleando dos métodos de propagación in vitro: semillas y areolas. El material vegetal fue colectado en la finca “La Exótica”, ubicada en el sitio Tres Charcos, cantón Rocafuerte, provincia de Manabí, Ecuador.
El material vegetal fue identificado y codificado según su origen y tipo de explante, asignándose el código 13-02-PPM01 para el material prove-niente de semilla y 13-02-PPM02 para el material obtenido a partir de areolas, con el fin de garan-tizar la trazabilidad durante las fases de estableci-miento, multiplicación y evaluación experimental.
Establecimiento y fase de multiplicación in vitro
Fase multiplicación semilla. Para este proceso se recolectaron frutos con grado de maduración de 5 a 6, en la escala referida por Pinzón et al. (2007). Se tomaron los frutos de la parte alta, media y baja de las plantas que tengan buenas características como: alta producción, alta ramificación y buena sanidad.
Los frutos se trasladaron al laboratorio, donde se mantuvieron a temperatura ambiente y se procesaron en un término no superior a 24 horas, después de la recolección. Los frutos maduros se sumergieron durante 14 horas en una solución de hipoclorito de sodio al 5%, seguido de un lavado con abundante agua y secado con papel absorbente (Tineo, 2024).
Para la obtener las semillas, se realizó un corte longitudinal al fruto con un bisturí desinfectado y se separó la pulpa de las semillas en un cernidor de aluminio, donde con suave presión se desprendió la pulpa y eliminó el mucílago, seguido del lavado con abundante agua. Posteriormente, para el secado de las semillas estuvieron durante 24 horas sobre papel absorbente en bandejas plásticas, en un área ventilada. En este momento se eliminaron manualmente los restos de pulpa y aquellas semillas con características no deseadas, como: reducido tamaño y estructura aplanada, seleccionan aquellas con coloración negro brillante y forma abultada.
Luego de la multiplicación los brotes regenerados in vitro, con una longitud aproximada de 1 a 3 cm, se transfirieron a un medio MS (Murashige y Skoog) reducido al 50% de su concentración salina y ANA (ácido naftalenacético) para inducir la formación de raíces. Los cultivos se mantuvieron en condiciones controladas de temperatura de 23 °C, y un fotoperiodo16 h de luz y 8 de oscuridad.
Fase multiplicación areolas. Para la toma de datos se seleccionaron en el campo plantas madre de pitahaya que reunieron las características morfológicas próximas al “ideotipo” (fenotipo ideal), donde se recolectaron areolas de un metro, que fueron cortados en varetas de 30 cm para sembrar en masetas, a nivel de invernadero, de la cual se obtuvieron brotes jóvenes, sanos y bien formados.
Los brotes sanos con características deseables fueron llevados a laboratorio para inducir nuevas brotaciones; se realizó un corte transversal dejando explantes de 1 cm, que fueron colocados en frascos de vidrio de 4 cm de altura y 4 cm de diámetro, contienen 25 mL de los diferentes medios de cultivos en estudio.
Los brotes fueron preparados dentro de una cámara de flujo laminar que es un ambiente estéril, para reducir el riesgo de contaminación (Gonzáles, 2020). Los brotes fueron desinfec-tados antes con hipoclorito de sodio al 3%, seguido de alcohol al 70%. Se preparó el medio de cultivo específico para cactáceas, usando el medio Murashige y Skoog (MS).
Fase de enraizamiento in vitro. En la fase de enraizamiento, los brotes obtenidos durante la etapa de multiplicación, tanto a partir de semillas como de areolas, fueron transferidos a medio Murashige y Skoog (MS) suplementado con diferentes combinaciones de auxinas, citoquininas y carbón activado. El efecto de estos tratamientos se evaluó sobre la inducción y el desarrollo del sistema radicular, realizándose esta fase de manera independiente para cada método de propagación estudiado.
Medio de cultivo Murashige y Skoog (MS)
Fase de Multiplicación semillas/areolas. Para la fase de multiplicación in vitro, a partir de semillas y areolas, se utilizó el medio basal Murashige y Skoog (MS), suplementado con ácido indolacético (AIA) en concentraciones de 0; 0,10; 0,30 y 0,50 mg/L y bencilaminopurina (BAP) en dosis de 0; 1; 2 y 3 mg/L. El medio se enriqueció con 30 g/L de sacarosa y preparado a partir de las soluciones estándar del MS, que aportan macronutrientes, micronutrientes, hierro quelatado y vitaminas esenciales para el desarrollo de las plántulas. Los componentes fueron disueltos en 1600 mL de agua destilada y distribuidos en 16 frascos de 100 mL, correspondientes a los diferentes tratamientos. Cada medio se solidificó con 0,30 g de agar y se ajustó el pH a 5,7 mediante NaOH o HCl (0,1 N o 1 N), según fuera necesario. Posteriormente, los medios fueron esterilizados en autoclave a 121 °C durante 20 min. Finalmente, cada tratamiento se dispensó en frascos de 20 mL. Los frascos fueron sellados para evitar contaminación y utilizados en la fase de multiplicación. Los experimentos se establecieron en cinco repeticiones.
Fase de enraizamiento de semillas/areolas. Para la fase de enraizamiento in vitro de plántulas obtenidas de semillas y areolas, se utilizó el medio basal Murashige y Skoog (MS), suplementado con carbón activado para evaluar su efecto sobre el desarrollo radicular. Se aplicaron combinaciones de ácido naftalenacético (ANA) a 0, 0,10 y 0,50 mg/L, 6-bencilaminopurina (BAP) a 0; 0,25 y 0,50 mg/L y carbón activado a 0 y 0,20 g/L.
Las soluciones se prepararon en 1620 mL de agua destilada, adicionando 30 g/L de sacarosa y las seis soluciones estándar del MS, además se distribuyó en 18 frascos y se ajustó el pH se ajustó a 5,7 mediante NaOH o HCl (0,1 N o 1 N) y los medios se solidificaron con 0,27 g de agar. Posteriormente, fueron esterilizados en autoclave a 121 °C durante 20 min. Cada tratamiento se distribuyó en frascos de 30 mL. El experimento se realizó en tres repeticiones por tratamiento. Los frascos fueron sellados y utilizados en la fase de enraizamiento.
Diseño experimental
El estudio se desarrolló mediante cuatro ensayos independientes, correspondientes a las fases de multiplicación y enraizamiento in vitro de pitahaya de pulpa morada (Selenicereus costaricensis), utilizando semillas y areolas como material vegetal.
En los ensayos de multiplicación por semilla y por areola, se empleó un diseño completamente al azar (DCA) con arreglo factorial A × B, donde el factor A correspondió a cuatro dosis de auxinas (0; 0,10; 0,30 y 0,50 mg/L Ácido indolacético AIA) y el factor B a cuatro dosis de citoquininas (0; 1; 2 y 3 mg/L 6-Bencilaminopurina BAP), conformando un total de 16 tratamientos, con cinco repeticiones por tratamiento.
Para los ensayos de enraizamiento por semilla y por areola, se utilizó un diseño completamente al azar (DCA) con arreglo factorial A × B × C, donde el factor A correspondió a tres dosis de auxinas (0; 0,10; 0,50 mg/L Ácido Naftalenacético ANA), el factor B a tres dosis de citoquininas (0; 0,25 mg; 0,50 mg /L 6-Bencilaminopurina BAP) y el factor C a dos dosis de carbón activado (0 y 0,20 g/L). En esta fase se evaluaron 18 tratamientos, con tres repeticiones por tratamiento.
En todos los ensayos, la unidad experimental estuvo constituida por un frasco que contenía tres explante.
Variables evaluadas
Las variables evaluadas se definieron de acuerdo con las fases del proceso de propagación in vitro de pitahaya de pulpa morada (Selenicereus costaricensis), propagada a partir de semillas y areolas.
Fase de multiplicación in vitro
Durante la fase de multiplicación se evaluaron variables morfológicas asociadas a la capacidad de brotación y desarrollo inicial de los explantes. Se registró el número de brotes por explante, determinado mediante conteo directo; la longitud del brote, medida desde la base hasta el ápice y expresada en centímetros; el diámetro del brote, medido en la zona media del brote con calibrador digital y expresado en milímetros; y la presencia de callo, registrada como la ocurrencia de formación callogénica en los explantes.
Fase de enraizamiento in vitro
En la fase de enraizamiento se evaluaron variables relacionadas con el crecimiento y vigor de las plántulas regeneradas. Se registró el volumen de la plántula, estimado mediante el método de desplazamiento de agua en probeta graduada; el peso fresco, determinado mediante pesaje en balanza analítica al finalizar el ensayo; el número de brotes, el diámetro del brote y la longitud del brote, medidos con la misma metodología descrita para la fase de multiplicación.
Análisis de datos
Para el análisis de datos, se utilizó un diseño experimental completamente al azar. Se realizó con énfasis en las medidas de tendencia central y de dispersión. “Los datos se analizaron mediante análisis de varianza (ANOVA) de experimento factorial y las medias se compararon con la prueba de Tukey (α = 0,05).
3. Resultados y discusión
Fase multiplicación semillas
En la Tabla 1 se presentan medias de las variables morfológicas de brotes de pitahaya de pulpa morada obtenidos a partir de semillas, evaluadas a los 60 días después de la siembra, en función de las dosis de auxinas y citoquininas durante la fase de multiplicación in vitro. Los resultados mostraron que la combinación de 0,30 mg/L de auxina con 3 mg/L de citoquinina permitió obtener el mayor número de brotes (13), indicando que las concentraciones moderadas de auxina junto con citoquininas en dosis medias son óptimas para la proliferación. Estos hallazgos coinciden con lo reportado por Bello et al. (2021) y Dewir et al. (2023), en Hylocereus undatus, quienes señalaron que la interacción hormonal es determinante para inducir la organogénesis y maximizar la tasa de multiplicación in vitro. A los 60 días, la mayor cantidad de brotes se alcanzó con 0,30 mg/L de auxina y 3 mg/L de citoquinina, lo que reafirma la influencia del equilibrio auxina–citoquinina sobre la proliferación de brotes.
En relación con la longitud de los brotes, la dosis de 0,30 mg/L de auxina sin citoquinina promovió el mayor crecimiento a los 60 días. Esto sugiere que la auxina favorece principalmente la elongación celular más que la proliferación, un fenómeno que coincide con lo observado por Shah et al. (2023) y Sabina et al. (2022), quienes reportaron que la auxina, en ausencia de citoquinina, potencia la elongación de los brotes sin inducir un aumento significativo en el número de brotes.
Para la variable diámetro de los brotes, la combinación de 0,50 mg/L de auxina y 3 mg/L de citoquinina produjo los valores más altos (5,3 mm), evidenciando que la citoquinina, en presencia de auxina, estimula el engrosamiento de los brotes. Este resultado concuerda con lo reportado por Carmona et al. (2025) y Cortés et al. (2023), quienes destacaron que las citoquininas contribuyen al vigor y desarrollo morfológico de los brotes in vitro, favoreciendo un balance entre proliferación y engrosamiento.
Adicionalmente, se observó una elevada frecuencia de formación de callos (87% de los explantes), lo que puede atribuirse a la acción de auxinas en concentraciones de moderadas a altas, coincidiendo con lo reportado por Lee & Chang. (2022) y Canales et al. (2025), quienes indican que las auxinas inducen callogénesis como respuesta inicial en explantes juveniles, especialmente cuando se emplean semillas como material de partida. Sin embargo, la coexistencia de callogénesis y brotación evidencia una elevada plasticidad morfogénica del material vegetal, característica deseable para el desarrollo de protocolos eficientes de propagación in vitro, ya que permite una respuesta adaptable tanto a la proliferación de brotes como a la regeneración adventicia.
De manera general, las combinaciones de 0,30 – 0,50 mg/L de auxina con 3 mg/L de citoquinina mostraron los efectos más consistentes sobre todas las variables morfológicas evaluadas. Este comportamiento indica que un equilibrio adecuado entre auxina y citoquinina es crítico para optimizar la multiplicación in vitro de pitahaya, lo cual ha sido ampliamente documentado en la literatura especializada Shah et al. (2023), donde la relevancia del ajuste de reguladores de crecimiento para protocolos eficientes de propagación de Hylocereus spp.
Fase multiplicación areolas
En la Tabla 2 se observan las medias de las variables morfológicas de brotes de pitahaya de pulpa morada obtenidos a partir de areolas, evaluadas a los 60 días después de la siembra, en función de las dosis de auxinas y citoquininas durante la fase de multiplicación in vitro. Se destaca que la dosis 0,50 mg/L de auxina y 2 mg/L de citoquinina a los 60 días después de la siembra. Estos resultados indican que un balance moderado entre auxina y citoquinina favorece la órgano-génesis, que señalan que la regulación hormonal es un factor clave para la inducción de brotes en Hylocereus spp., permitiendo un control eficiente de la proliferación celular en cultivos in vitro (Shah et al., 2023).
En cuanto a la elongación de los brotes, los valores más altos, a los 60 días, se lograron con 0,30 mg/L de auxina y 1 – 2 mg/L de citoquinina (21,9 – 22,7 mm). Las dosis de auxina favoreció principalmente en la elongación celular, mientras que niveles intermedios de citoquinina no inhiben este efecto, lo que concuerda con estudios que describen cómo los reguladores de crecimiento modulan diferencial-mente la división y elongación celular en pitahaya y otras especies de cactus (Neta et al., 2022).
La mejor respuesta de diámetro de brotes (5,4 mm a los 60 días) se observó con 0,30 mg/L de auxina sin citoquinina. La citoquinina estimula la formación de brotes, la auxina puede ser más eficaz para promover el engrosamiento de tejido en determinadas fases de desarrollo (Carmona et al., 2025).
La combinación apropiada de auxinas y citoquininas correctamente mejora la proliferación de brotes, favorece el vigor de los explantes, lo cual es esencial para establecer protocolos de micropropagación eficientes y reproducibles en Hylocereus spp. (Shah et al., 2023).
Tabla 1
Medias de las variables morfológicas de brotes de pitahaya de pulpa morada obtenidos a partir de semillas, evaluadas a los 60 días después de la siembra, en función de las dosis de auxinas y citoquininas durante la fase de multiplicación in vitro
Auxinas (mg/L) | Citoquininas (mg/L) | 60 días después del cultivo in vitro | |||||
Número de brotes 60D | Longitud de brote 60D (mm) | Diámetro de brote 60D (mm) | |||||
0 | 0 | 3 | e | 10,5 | d | 4,5 | abcd |
0 | 1 | 5 | de | 10,9 | d | 3,9 | bcd |
0 | 2 | 5 | de | 13,5 | abcd | 4,8 | ab |
0 | 3 | 6 | cde | 13,1 | cd | 4,0 | bcd |
0,10 | 0 | 10 | abc | 11,5 | d | 3,7 | cd |
0,10 | 1 | 5 | de | 13,4 | bcd | 4,7 | abc |
0,10 | 2 | 8 | bcd | 14,3 | abcd | 4,5 | abcd |
0,10 | 3 | 7 | cde | 13,6 | abcd | 4,3 | abcd |
0,30 | 0 | 5 | de | 18,0 | a | 4,3 | abcd |
0,30 | 1 | 8 | bcde | 13,9 | abcd | 3,5 | d |
0,30 | 2 | 7 | cde | 16,5 | abc | 4,3 | abcd |
0,30 | 3 | 13 | a | 14,8 | abcd | 4,6 | abcd |
0,50 | 0 | 8 | bcd | 16,6 | abc | 4,1 | bcd |
0,50 | 1 | 8 | bcde | 17,7 | ab | 4,4 | abcd |
0,50 | 2 | 12 | ab | 17,1 | abc | 4,3 | abcd |
0,50 | 3 | 7 | bcde | 16,9 | abc | 5,3 | a |
Media general | 7 | 14,5 | 4,3 | ||||
CV (%) | 49,12 | 25,13 | 20,07 | ||||
Nota: Medias seguidas por letras iguales en la misma columna no difieren significativamente, según la prueba de Tukey (α = 0,05).
Tabla 2
Medias de las variables morfológicas de brotes de pitahaya de pulpa morada obtenidos a partir de areolas, evaluadas a los 60 días después de la siembra, en función de las dosis de auxinas y citoquininas durante la fase de multiplicación in vitro
Auxinas (mg/L) | Citoquininas (mg/L) | 60 días después del cultivo in vitro | |||||
Número de brotes 60D | Longitud de brote 60D (mm) | Diámetro de brote 60D (mm) | |||||
0 | 0 | 4 | d | 10,1 | gh | 3,8 | bc |
0 | 1 | 4 | cd | 11,9 | fgh | 4,5 | abc |
0 | 2 | 6 | bcd | 12,4 | efgh | 4,6 | abc |
0 | 3 | 6 | bcd | 9,3 | h | 3,5 | c |
0,10 | 0 | 6 | bcd | 13,4 | defgh | 4,7 | abc |
0,10 | 1 | 6 | bcd | 16,9 | cd | 4,5 | abc |
0,10 | 2 | 6 | bcd | 16,4 | cde | 4,0 | bc |
0,10 | 3 | 7 | B | 18,4 | abc | 5,0 | ab |
0,30 | 0 | 7 | bc | 17,7 | bcd | 5,4 | a |
0,30 | 1 | 8 | b | 21,9 | ab | 4,5 | abc |
0,30 | 2 | 7 | b | 22,7 | a | 5,0 | ab |
0,30 | 3 | 5 | bcd | 17,0 | cd | 4,8 | ab |
0,50 | 0 | 6 | bcd | 14,4 | cdefg | 4,7 | abc |
0,50 | 1 | 7 | bcd | 11,3 | gh | 4,1 | bc |
0,50 | 2 | 12 | A | 16,3 | cdef | 5,0 | ab |
0,50 | 3 | 5 | bcd | 18,1 | bc | 4,3 | abc |
Media general | 6 | 15,5 | 4,5 | ||||
CV (%) | 42,72 | 22,94 | 21,93 | ||||
Nota: Medias seguidas por letras iguales en la misma columna no difieren significativamente, según la prueba de Tukey (α = 0,05).
Se evidenció una elevada proporción de explantes con formación de callo (71%), particularmente a los 60 días después de la siembra. Este comportamiento está relacionado con la presencia de auxinas en el medio de cultivo y su interacción con citoquininas. No obstante, la formación de callo no impidió la regeneración de brotes. La presencia controlada de callo puede actuar como un reservorio celular con alta plasticidad, favoreciendo la regeneración de brotes cuando el balance hormonal es adecuado (Hamm et al., 2022; Izadi et al., 2023).
En general, la combinación más eficiente de reguladores de crecimiento se expresó con dosis de 0,30 – 0,50 mg/L de auxina y 2 – 3 mg/L de citoquinina, generando los efectos más consistentes sobre todas las variables morfológicas. Este hallazgo respalda la importancia del balance hormonal auxina y citoquinina para optimizar protocolos de micropropagación in vitro de pitahaya por areolas, ya que un adecuado equilibrio no solo estimula la proliferación de brotes, sino que también influye en su desarrollo morfológico, uniformidad y vigor. Se destaca que, en Hylocereus spp., la combinación de reguladores de crecimiento es fundamental para lograr tasas de multiplicación superiores y material vegetal de alta calidad para producción comercial y conservación de germoplasma (Shah et al., 2023).
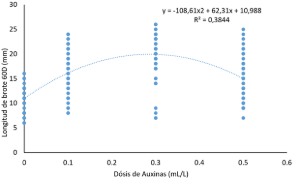
En la Figura 1 se presenta la regresión cuadrática de la longitud de brotes a los 60 días durante la multiplicación in vitro vía areolas en función de las dosis de auxinas. El modelo evidenció un incremento progresivo de la elongación del brote dentro del rango de dosis evaluado, seguido de una tendencia decreciente, describiendo un comportamiento cuadrático. La regresión estimó un máximo teórico de elongación en una dosis aproximada de 1,15 mg/L de auxina, valor que no fue evaluado experimentalmente, pero que sugiere la existencia de un nivel óptimo hormonal para la elongación celular. El coeficiente de determinación moderado (R² = 0,3844) indica que, el efecto de la auxina, otros factores como la interacción con citoquininas y las condiciones fisiológicas del explante influyeron en la respuesta observada. Este patrón concuerda con estudios previos en Hylocereus spp., donde se destaca la necesidad de ajustar cuidadosamente las concentraciones de reguladores de crecimiento para optimizar la proliferación y la calidad morfológica de los brotes (Shah et al., 2023; Neta et al., 2022).
Fase enraizamiento semilla
En la Tabla 3 se muestran las medias de las variables morfológicas de brotes de pitahaya de pulpa morada, evaluadas a los 60 días después de la siembra, en función de las dosis de auxinas, citoquininas y carbón activado, donde el mayor peso de los explantes a los 60 días (3,77 g) se obtuvo con la combinación de 0,10 mg/L de auxina, 0,50 mg/L de citoquinina y ausencia de carbón activado, advierten que el carbón posee una naturaleza no selectiva, pudiendo adsorber no solo metabolitos tóxicos sino también reguladores de crecimiento y nutrientes esenciales del medio MS (Abughnia et al., 2025). Sugiriendo que las concentraciones mínimas de reguladores de crecimiento son suficientes para activar el metabolismo primario en Hylocereus spp., sin inducir estrés fisiológico ni la formación excesiva de tejido calloso, fenómeno que suele limitar la acumulación de biomasa.
Este fenómeno concuerda con lo reportado por Neta et al. (2022) y Lee & Chang. (2022), quienes indican que la pitahaya, particularmente los genotipos de pulpa roja y morada presentan una elevada sensibilidad a las citoquininas, de modo que dosis bajas favorecen una partición eficiente de asimilados y una ganancia temprana de biomasa, mientras que concentraciones elevadas pueden alterar el equilibrio hormonal y afectar negativamente el crecimiento inicial.
El número de brotes fueron superiores con la combinación de 0,5 mg/L de auxina, 0,50 mg/L de citoquinina y 0,20 g/L de carbón activado, evidenciando una marcada sinergia auxina–citoquinina que favorece la organogénesis adventicia y el vigor de los brotes. Resultados similares han sido descritos por Carmona et al. (2025); Lee & Chang. (2022), donde las concentraciones elevadas de citoquininas en presencia de auxinas incrementan la proliferación y calidad de los brotes.
En cuanto al diámetro del brote, las mayores res-puestas se asociaron a concentraciones, de 0 mg/L de auxina, 0,50 mg/L de citoquinina y 0,20 g/L de carbón activado, confirma expansión celular y el engrosamiento de tejidos, compor-tamiento consistente con lo reportado en pitahaya y otras cactáceas cultivadas in vitro (Bozkurt et al., 2022). Respecto al sistema radical, la mayor cantidad y longitud de raíces se obtuvo con dosis intermedias de auxina de 0,10 mg/L, 0,25-0,50 mg/L de citoquininas y 0,20 g/L de carbón activado, resalta la importancia del balance hormonal y del carbón activado en la rizogénesis y elongación radical, al reducir compuestos inhibitorios y mejorar la disponibilidad hormonal (Lee & Chang, 2022; Mállap et al., 2021).
En general, la combinación de 0,50 mg/L de auxina, 0,50 mg/L de citoquinina y 0,20 g/L de carbón activado se identificó como la más eficiente para la multiplicación in vitro de pitahaya de pulpa morada, al optimizar simultáneamente la cantidad y calidad de los brotes, en concordancia con lo reportado por Lee & Chang. (2022); Neta et al. (2022); Bozkurt et al.(2022) y Mállap et al. (2021).
En la Figura 2 se muestra el análisis de compo-nentes principales (ACP) del enraizamiento de brotes de pitahaya morada proveniente de semi-llas, usando las variables morfológicas evaluadas a los 60 días. Los dos primeros componentes explicaron el 91,2% de la variación total, corres-pondiendo el 78,3% al CP1 y el 12,9% al CP2.
El CP1 estuvo asociado principalmente con variables de crecimiento y la acumulación de biomasa, tales como: peso y número de brotes evaluados en ambos periodos. En cambio, el CP2 estuvo influenciado por variables vinculadas al desarrollo morfológico, destacándose la longitud y el diámetro de brotes, así como el número de raíces, especialmente a los 60 días. Investi-gaciones sobre regeneración in vitro en H. guatemalensis lograron altos porcentajes de enraizamiento y brotación al emplear diferentes medios y auxinas, lo que apoya la importancia de las variables morfológicas que cargan sobre CP1 y CP2, reflejando procesos de crecimiento vege-tativo y desarrollo estructural (Canales et al., 2025). También se mostró que la modificación de medio y reguladores influye en la formación de brotes y raíces, reforzando que las de variables morfológicas claramente pueden agruparse y explicar gran parte de la variación total en estudios de fenotipado in vitro (Lee & Chang, 2022).
En la Figura 3 se muestra la regresión lineal entre el número de brotes y el peso del brote a los 60 días del establecimiento in vitro después de la siembra, donde se observó una relación positiva entre el número de brotes y el peso de los brotes. La regresión lineal indicó que, por cada brote adicional, el peso promedio aumenta aproxima-damente 0,19 g, con Y = 0,1923x, R² = 0,8805, lo que sugiere que la variación en el número de brotes explica gran parte del peso observado de los brotes. En reportes de micropropagación de pitahaya amarilla (Hylocereus megalanthus), se encontró que las condiciones de cultivo que favorecieron un mayor número de brotes también se asociaron con mejores tasas de enraizamiento y desarrollo de raíces (Mállap et al., 2021).
En la Tabla 4 se presentan las medias de las variables morfológicas de brotes de pitahaya de pulpa morada obtenidos a partir de areolas, evaluadas a los 60 días después de la siembra, en función de las dosis de auxinas, citoquininas y carbón activado durante la fase de enraizamiento in vitro. De manera general, las variables analizadas evidenciaron respuestas diferenciales según la combinación de reguladores de crecimiento y la incorporación de carbón al medio de cultivo.
En cuanto al peso de los explantes, evaluado a los 60 días, los valores más altos se asociaron con la dosis de 0,50 mg/L de auxina, 0,50 mg/L de citoquinina y 0,20 g de carbón activado.
Respecto al número de brotes, tanto a los 60 días después de la siembra, predominó el tratamiento conformado por 0,50 mg/L de auxina, 0,50 mg/L de citoquinina y 0,20 g de carbón activado. De manera similar, la longitud del brote registró los mayores valores a ambos momentos de evaluación con la combinación de 0,10 mg/L de auxina, 0,50 mg/L de citoquinina y 0,20 g de carbón activado, alcanzando valores compren-didos entre 41,11 mm.
Tabla 3
Medias de las variables morfológicas de brotes de pitahaya de pulpa morada, evaluadas a los 60 días después de la siembra, en función de las dosis de auxinas, citoquininas y carbón activado
Auxinas (mg/L) | Citoquininas (mg/L) | Carbón (g/L) | 60 días después del cultivo in vitro | ||||||||||||
Número de brotes 60D | Longitud de brote 60D (mm) | Diámetro de brote 60D (mm) | Número de raíz 60D | Longitud de raíz 60D (mm) | Peso 60D (g) | ||||||||||
0 | 0 | 0 | 7 | efg | 14,2 | g | 4,6 | ab | 4 | 4f | 25,9 | ef | 1,2 | de | |
0 | 0,25 | 0 | 6 | fg | 25,0 | cdef | 4,9 | ab | 8 | cde | 34,6 | def | 0,7 | e | |
0 | 0,50 | 0 | 13 | abc | 24,2 | cdef | 4,4 | ab | 10 | abcd | 47,8 | abc | 3,6 | a | |
0,10 | 0 | 0 | 10 | cde | 17,0 | fg | 5,0 | ab | 6 | ef | 26,2 | ef | 1,5 | cde | |
0,10 | 0,25 | 0 | 9 | defg | 23,7 | cdef | 4,8 | ab | 8 | bcde | 28,9 | ef | 1,5 | cde | |
0,10 | 0,50 | 0 | 14 | ab | 32,8 | abc | 4,6 | ab | 9 | abcde | 55,2 | ab | 3,8 | a | |
0,50 | 0 | 0 | 9 | defg | 20,2 | efg | 4,7 | ab | 6 | ef | 26,2 | ef | 1,4 | de | |
0,50 | 0,25 | 0 | 5 | g | 26,7 | bcde | 4,8 | ab | 7 | cdef | 26,2 | ef | 0,6 | e | |
0,50 | 0,50 | 0 | 13 | abc | 37,4 | a | 5,3 | a | 10 | abc | 58,4 | a | 2,9 | ab | |
0 | 0 | 0,20 | 10 | cdef | 19,9 | efg | 3,9 | b | 6 | ef | 31,4 | def | 1,5 | cde | |
0 | 0,25 | 0,20 | 10 | cde | 25,3 | cdef | 4,3 | ab | 8 | bcde | 50,1 | ab | 1,6 | bcde | |
0 | 0,50 | 0,20 | 13 | abc | 35,0 | ab | 5,7 | a | 8 | bcde | 28,9 | ef | 2,4 | abcd | |
0,10 | 0 | 0,20 | 10 | cde | 18,7 | efg | 3,9 | b | 6 | ef | 36,2 | cde | 1,8 | bcde | |
0,10 | 0,25 | 0,20 | 8 | defg | 25,2 | cdef | 5,2 | ab | 12 | a | 47,0 | abc | 0,8 | e | |
0,10 | 0,50 | 0,20 | 11 | bcd | 26,3 | bcdef | 5,3 | a | 12 | a | 43,4 | bcd | 1,8 | bcde | |
0,50 | 0 | 0,20 | 7 | defg | 22,4 | defg | 5,0 | ab | 7 | def | 23,0 | f | 0,8 | e | |
0,50 | 0,25 | 0,20 | 10 | cdef | 24,3 | cdef | 5,3 | a | 10 | abc | 51,3 | ab | 1,5 | cde | |
0,50 | 0,50 | 0,20 | 16 | a | 30,6 | abcd | 5,0 | ab | 11 | ab | 56,3 | a | 2,8 | abc | |
Media general | 10 | 24,94 | 4,81 | 8 | 38,73 | 1,78 | |||||||||
CV (%) | 22,43 | 22,95 | 16,96 | 25,11 | 19,34 | 47,34 | |||||||||
Nota: Los valores presentados son medias ± error estándar. Letras diferentes en la misma fila indican diferencias significativas según la prueba de Tukey (α = 0,05). Abreviaturas: 60D = 60 días después del cultivo in vitro; CV = coeficiente de variación (%).
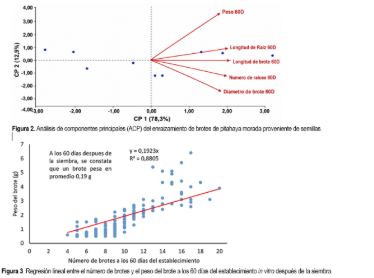
Tabla 4
Medias de las variables morfológicas de brotes de pitahaya de pulpa morada obtenidos a partir de areolas, evaluadas a los 60 días después de la siembra, en función de las dosis de auxinas, citoquininas y carbón activado durante la fase de enraizamiento
Auxinas (mg/L) | Citoquininas (mg/L) | Carbón (g/L) | 60 días después del cultivo in vitro | |||||||||||
Número de brotes 60D | Longitud de brote 60D (mm) | Diámetro de brote 60D (mm) | Número de raíz 60D (mm) | Longitud de raíz 60D (mm) | Peso 60D (g) | |||||||||
0 | 0 | 0 | 5 | f | 24,7 | ef | 4,7 | g | 4 | fg | 14,9 | fg | 1,3 | hij |
0 | 0,25 | 0 | 13 | bcd | 28,2 | cdef | 5,4 | cdefg | 6 | defg | 19,0 | defg | 2,5 | efg |
0 | 0,50 | 0 | 15 | ab | 31,1 | bcdef | 6,9 | a | 8 | bcd | 36,1 | ab | 3,0 | de |
0,10 | 0 | 0 | 6 | bcd | 24,0 | ef | 5,9 | abcdef | 4 | g | 11,0 | defg | 0,9 | j |
0,10 | 0,25 | 0 | 12 | bcd | 24,1 | ef | 6,6 | abc | 8 | bcde | 19,7 | def | 2,2 | efg |
0,10 | 0,50 | 0 | 12 | bcd | 28,9 | cdef | 6,7 | ab | 7 | cdef | 41,4 | a | 3,3 | cde |
0,50 | 0 | 0 | 8 | def | 26,7 | def | 5,2 | efg | 4 | g | 15,4 | fg | 1,2 | ij |
0,50 | 0,25 | 0 | 9 | def | 27,1 | cdef | 5,9 | abcdef | 6 | cdefg | 17,7 | efg | 1,5 | fghij |
0,50 | 0,50 | 0 | 15 | ab | 37,6 | ab | 5,6 | bcdefg | 12 | a | 25,3 | cde | 3,8 | bcd |
0 | 0 | 0,2 | 10 | cde | 23,7 | f | 4,6 | g | 5 | efg | 14,8 | fg | 1,4 | ghij |
0 | 0,25 | 0,2 | 12 | bcd | 26,4 | ef | 5,0 | fg | 6 | defg | 19,8 | def | 2,4 | efgh |
0 | 0,50 | 0,2 | 12 | bcd | 28,7 | cdef | 5,1 | ef | 11 | ab | 21,4 | def | 4,2 | bc |
0,10 | 0 | 0,2 | 11 | bcd | 27,4 | cdef | 5,4 | cdefg | 5 | defg | 19,7 | defg | 1,7 | fghij |
0,10 | 0,25 | 0,2 | 11 | bcd | 31,7 | bcde | 6,2 | abcde | 7 | cdef | 25,8 | cde | 2,5 | efg |
0,10 | 0,50 | 0,2 | 14 | bc | 41,1 | a | 5,7 | bcdefg | 8 | ab | 27,0 | bcd | 4,9 | ab |
0,50 | 0 | 0,2 | 11 | bcd | 29,0 | cdef | 5,3 | defg | 6 | defg | 14,7 | fg | 1,8 | fghij |
0,50 | 0,25 | 0,2 | 11 | bcd | 34,3 | abcd | 6,4 | abcde | 10 | abc | 34,1 | abc | 2,6 | ef |
0,50 | 0,50 | 0,2 | 19 | a | 34,4 | abc | 5,4 | cdefg | 8 | bcd | 42,7 | a | 5,4 | a |
Media general | 12 | 29,4 | 5,67 | 7 | 23,36 | 2,59 | ||||||||
CV (%) | 23,31 | 15,85 | 12,5 | 29,43 | 23,9 | 26,23 | ||||||||
Nota: Los valores presentados son medias ± error estándar. Letras diferentes en la misma fila indican diferencias significativas, según la prueba Tukey (α = 0,05). Abreviaturas: 60D = 60 días después del cultivo in vitro; CV = coeficiente de variación (%).
Este comportamiento concuerda con lo reportado por (Lee & Chang., 2022). De manera similar, Bozkurt et al. (2022) señalaron incrementos significativos en número y longitud de brotes cuando se emplean concentraciones eleva-das de citoquininas en combinación con auxinas.
En relación con el diámetro del brote, a los 60 días, el tratamiento con 0 mg/L de auxina, 0,50 mg/L de citoquinina y 0 g de carbón activado alcanzó el mayor diámetro de brote (6,89 mm). Con respecto al número de raíces, la combinación de 0,50 mg/L de auxina, 0,50 mg/L de citoquinina y 0 g de carbón activado registró un promedio de 12 raíces por explante.
La longitud de raíz, evaluada a los 60 días después de la siembra, fue favorecida por el tratamiento compuesto por 0,50 mg/L de auxina, 0,50 mg/L de citoquinina y 0,20 g/L de carbón activado. El peso de los explantes de 5,40 g a los 60 días después de la siembra, reflejó un mayor desarrollo radicular de los explantes cultivados in vitro.
La mejor combinación de reguladores de crecimiento para la propagación in vitro de pitahaya morada correspondió a 0,50 mg/L de auxina y 0,50 mg/L de citoquinina, suplementada con 0,20 g/L de carbón activado. Esta dosis permitió maximizar todas las variables evaluadas, incluyendo número y longitud de brotes, número y longitud de raíces, volumen del cultivo y peso fresco de los brotes a los 60 días de cultivo. El carbón activado contribuyó un ligero incremento en la longitud y número de raíces, mientras que las características morfológicas de los brotes no se vieron afectadas de manera consistente.
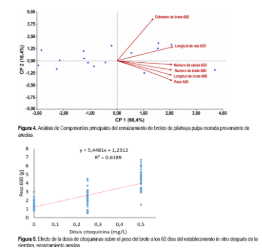
En la Figura 4 se observa el Análisis de Compo-nentes principales (ACP) del enraizamiento de brotes de pitahaya pulpa morada proveniente de areolas, donde se permitió explicar el 68,0% de la variación total; el CP1 explicó el 66,4% y el CP2 el 16,4% de la variabilidad observada en las variables morfológicas evaluadas.
El CP1 estuvo principalmente asociado con variables de crecimiento y acumulación de biomasa, destacándose el peso, volumen, número de brotes y longitud de brote, evaluadas a los 60 días. Por su parte, el CP2 estuvo influenciado principalmente por el diámetro de brote y la longitud de raíz a los 60 días, variables vinculadas al desarrollo estructural de los brotes.
Este patrón de distribución de variables en ejes principales es consistente con lo observado en estudios de micropropagación de pitaya, como el de Lee & Chang (2022) en Hylocereus polyrhizus ‘Da Hong’, donde el uso de combinaciones de reguladores de crecimiento y carbón activado influyó de forma diferencial en variables morfológicas y de crecimiento: (por ejemplo, peso y número de brotes). Las correlaciones entre estas variables indicaron que algunos parámetros de crecimiento se comportan de manera integrada mientras otros son independientes.
En la Figura 5 se evidencian los efectos de la dosis de citoquininas sobre el peso del brote a los 60 días del establecimiento in vitro después de la siembra, en el enraizamiento de areolas. La relación entre la dosis de citoquininas y el peso del brote a los 60 días después de la siembra (60 DDS) mostró una tendencia lineal positiva. El modelo de regresión ajustado (R² = 0,6189), lo que indica que el 61,9% de la variación en el peso del brote fue explicada por la dosis de citoquininas aplicada. El intercepto del modelo sugiere que, en ausencia de citoquininas, el peso promedio del brote alcanzó 1,23 g. Asimismo, la pendiente indica que por cada incremento de 0,5 mg/L de citoquininas, el peso del brote aumentó en aproximadamente 2,75 g, evidenciando un efecto positivo de este regulador de crecimiento sobre la acumulación de biomasa.
Estos patrones concuerdan con lo observado Neta et al. (2022), donde el uso de citoquinina BAP estimuló de manera significativa la produc-ción de brotes y aumentó la masa fresca de explantes respecto al control, aunque la respuesta varió entre especies y tratamientos. Estos resul-tados respaldan que la optimización de la dosis de citoquininas, como BAP, es un factor clave para maximizar el vigor y peso de brotes durante la micropropagación de pitahaya pulpa morada, lo que se traduce en mejoras en la acumulación de biomasa bajo condiciones controladas.
El promedio del peso del brote, cuando no se usa citoquininas alcanza 1,23 g. Por cada 0,5 mg/L de citoquinina se gana un peso equivalente a 2,75 g, a los 60DDS.
En la Tabla 5 se comparan los métodos usados en el presente estudio contrastando con investigaciones previas, donde se evidencia que la propagación in vitro de pitahaya depende de la interacción entre el tipo de explante, la compo-sición del medio de cultivo y la concentración de los reguladores de crecimiento. El protocolo desa-rrollado presenta una ventaja, la micropropa-gación de semillas y areolas como explantes, permiten obtener un elevado número de brotes, mayor longitud radicular y un desarrollo uniforme de las plántulas, mediante el uso combinado de ANA, BAP y carbón activado.
Estos resultados coinciden con los reportados por Ahmed et al. (2026), quienes demostraron que la optimización simultánea del medio de cultivo y de los reguladores de crecimiento incrementa signifi-cativamente el establecimiento, la proliferación de brotes, el enraizamiento y la supervivencia.
La elevada proliferación de brotes coincide con los resultados de Carmona et al. (2025) y Pech et al. (2026), quienes demostraron que la respuesta organogénica en pitahaya está estrechamente relacionada con el equilibrio entre auxinas y citoquininas. Estos reguladores promueven la división y diferenciación celular, favorecen la formación de nuevos brotes y mejoran el establecimiento in vitro de los explantes. La combinación de 0,50 mg L⁻¹ de ANA y 0,50 mg L⁻¹ de BAP usada en el presente estudio permitió alcanzar respuestas morfogénicas significativas.
La incorporación de carbón activado, en la fase de establecimiento, favoreció el desarrollo radicular y el incremento del peso fresco de las plántulas. El carbón activado es capaz de adsorber compues-tos fenólicos y otros metabolitos inhibidores libera-dos por los explantes, reduciendo la oxidación y creando un ambiente favorable para la diferencia-ción y elongación de raíces (Lee & Chang, 2022).
Tabla 5
Comparación del protocolo de propagación in vitro propuesto con otras investigaciones en pitahaya y otras especies de interés económico
Especie | Tipo de explante | Reguladores de crecimiento | Principales resultados reportados | Comparación con el presente estudio | Referencia |
Selenicereus costaricensis | Semillas y areolas | Multiplicación: 0,50 mg∙L-1 ANA + 0,50 mg/L BAP. Enraizamiento: 0,50 mg∙L-1 ANA + 0,50 mg∙L-1 BAP + 0,20 g.L-1 carbón activado | Mayor número de brotes, mayor longitud de raíces, mayor peso fresco y desarrollo uniforme de plántulas | Propagación a partir de semillas y areolas, con altas respuestas morfológicas y desarrollo radicular de las vitroplantas | Presente estudio |
Selenicereus costaricensis | Segmentos nodales | Diferentes medios de cultivo suplementados con auxinas y citoquininas | Optimización del establecimiento, proliferación de brotes, enraizamiento y aclimatación con ajuste del medio de cultivo y reguladores de crecimiento | Importancia de optimizar el medio de cultivo y los reguladores de crecimiento. En el estudio se probó, además de semillas, la multiplicación a partir de areolas | Ahmed et al. (2026) |
Selenicereus undatus | Tallos | BAP + ANA | Alta proliferación de brotes y regeneración eficiente | Resultados similares. Se optimizó el enraizamiento usando carbón activado | Carmona et al. (2025) |
Selenicereus costaricensis | Segmentos de tallo | BAP + carbón activado | Mayor longitud de brotes y mejor calidad de vitroplantas | Efecto positivo del carbón activado. Coincide con los resultados | Lee & Chang (2022) |
Selenicereus megalanthus | Plántulas obtenidas de semilla | ANA + BAP | Multiplicación eficiente y adecuado enraizamiento | Se logró respuestas similares utilizando areolas como fuente de explantes | Mállap et al. (2021) |
Selenicereus undatus | Brotes | Sistema de inmersión temporal | Alta tasa de multiplicación | La inmersión temporal permite un mayor escalamiento. Requiere de infraestructura especializada. En el estudio se adoptó el procedimiento convencional | Bello et al. (2021) |
Aloe vera | Yemas | Auxinas + citoquininas | Buena multiplicación por efecto de la interacción hormonal | Confirmó que el equilibrio auxina/citoquinina también favorece la organogénesis | Sabina et al. (2022) |
Respecto de la combinación de ANA y BAP, se considera que favorece la multiplicación y el desarrollo radicular, de acuerdo con Mállap et al. (2021). El protocolo desarrollado en esta investigación incorpora el uso de areolas como material inicial, lo que incrementa su aplicabilidad para la propagación de genotipos élite y facilita la obtención de plantas uniformes. Los sistemas de inmersión temporal, descritos por Bello et al. (2021), permiten alcanzar mayores tasas de multiplicación, requieren de infraestructura especializada y mayores costos de implemen-tación. En este estudio, se utilizó un sistema convencional de cultivo in vitro, lo que representa una alternativa técnicamente viable y económicamente más accesible para laboratorios con recursos limitados, sin comprometer la calidad de las vitro plántulas.
El análisis comparativo demuestra que el proto-colo desarrollado constituye un aporte relevante para la micropropagación de Selenicereus costaricensis, al integrar diferentes tipos de explantes y optimizar las fases de multiplicación y enraizamiento mediante el empleo de reguladores de crecimiento y carbón activado. Estas características incrementan su potencial de aplicación en la reproducción masiva de material vegetal, en la conservación de germoplasma y en el establecimiento de plantaciones comerciales sanas y genéticamente uniformes.
4. Conclusiones
El método alternativo de propagación in vitro de genotipos de pitahaya de pulpa morada, a partir de semillas y areolas, integrando las fases de multiplicación y enraizamiento, permitió la obtención de plántulas uniformes y con adecuado desarrollo morfológico.
En la fase de multiplicación in vitro, la combinación de 0,50 mg/L de auxinas y 2 mg/L de citoquininas promovió las mayores tasas de multiplicación tanto en explantes provenientes de semillas como de areolas. No obstante, una mezcla balanceada de auxinas de tipo ANA y Citoquininas BAP mostro un efecto diferenciado en el número y longitud de brotes con 0,50 mg/L de auxinas y 0,50 mg/L de citoquininas. Lo que sugiere que la estimulación inicial del tejido celular y activación meristemática por efecto de las citoquininas y una reducción posterior genera tasas de multiplicación significativas.
En el enraizamiento, los explantes derivados de semillas respondieron favorablemente a la incorporación de 0,20 g/L de carbón activado, con 0,50 mg/L de auxinas y 0,50 mg/L de citoquininas, expresándose en el incremento de significativo del número de raíces, la longitud radicular y el peso fresco, evidenciando un efecto positivo del carbón activado sobre la calidad del sistema radicular.
En el enraizamiento in vitro a partir de areolas, la mejor respuesta se obtuvo con la combinación 0,50 mg/L de auxinas, 0,50 mg/L de citoquininas y 0,20 g/L de carbón activado, alcanzándose los valores más altos de longitud de raíz, número de raíces y peso fresco.
Referencias bibliográficas
Abughnia, E., Saleh, A., Belkair, S., Salem, M., & Lazrag, K. (2025). Evaluation Role of Activated Charcoal and Growth Regulators on Enhancement of Thymus Capitatus Micropropagation. Faculty of Science-Sirte University, 5(2), 1–8. https://doi.org/10.37375/issn.2789-858X
Ahmed, E., Hussien, E., Ahmed, M., Nasser, M., Razik, A., & Aly, H. (2026). Integrated media and plant growth regulators comparative evaluation for enhanced in vitro propagation and acclimatization of Selenicereus Costaricensis. BMC Plant Biol, 26, 1–14. https://doi.org/10.1186/s12870-026-08246-x
Bello, J., Schettino, S., Ortega, J., & Spinoso, J. (2021). A temporary immersion system for mass micropropagation of pitahaya (Hylocereus undatus). 3 Biotech, 11(10), 1–8. https://doi.org/10.1007/s13205-021-02984-5
Bettoni, J., Wang, M., & Wang, Q. (2024). In Vitro Regeneration, Micropropagation and Germplasm Conservation of Horticultural Plants. Horticulturae, 10(1), 1–5. https://doi.org/10.3390/horticulturae10010045
Bozkurt, T., İnan, S., & Dündar, İ. (2020). Micropropagation of Different Pitaya Varieties. International Journal of Agricultural and Natural Sciences, 13(1), 39–46.
Bozkurt, T., İnan, S., Dündar, İ., & Özdemir, S. (2022). Effect of Different Plant Growth Regulators on Micropropagation of Some Pitaya Varieties. Journal of Tropical Life Science, 12(2), 183–190. https://doi.org/10.11594/jtls.12.02.04
Canales, E., Navarro, B., Melgarejo, M., Ricky, P., Campos, Á., & Luis, G. (2025). Pitahaya (Hylocereus guatemalensis) explants from areoles: Protocol for in vitro regeneration regeneration and successful acclimatization. Scientia Agropecuaria, 16(3), 427–438. https://doi.org/10.17268/sci.agropecu.2025.033
Carmona, E., Conde, F., & Cesar, P. (2025). Progress towards in vitro shoot regeneration and genetic transformation in pitaya (Hylocereus undatus) cladode sections. Plant Biotechnology, 162(2), 1–10. https://doi.org/10.1007/s11240-025-03153-9
Chen, M., Li, R., Zhang, L., Zhang, B., Dong, X., Wang, S., Zhang, W., & Bai, X. (2026). Current progress on identifying chemical constituents, bioactivities, and food-industry applications of pitaya (Selenicereus spp.) whole plant. Frontiers in Nutrition, 13. https://doi.org/10.3389/fnut.2026.1886438
Cortés, C., Guerra, V., Blanca, V., & Rodríguez, A. (2023). Fancy (Cactaceae): Developmental responses to different explant types and hormone conditions. Plants, 12(23), 1–30. https://doi.org/10.3390/plants12233932
Dewir, Y., Habib, M., Alaizari, A., Malik, J., Al-ali, A., Al-qarawi, A., & Alwahibi, M. (2023). Promising Application of Automated Liquid Culture System and Arbuscular Mycorrhizal Fungi for Large-Scale Micropropagation of Red Dragon Fruit. Plants, 12(5), 1–13. https://doi.org/10.3390/ plants12051037
Gonzáles, G. (2020). Micropropagación in vitro de pitahaya amarilla (Selenicereus megalanthus Haw) a partir de tallos seleccionados de siembra comerciales, Limoncito - Santa Elena [Universidad Agraria del Ecuador].
Hamm, T., Boggess, S., Kandel, J., Staton, M., Huff, M. L., Hadziabdic, D., Shoemaker, D., Adamczyk, J., Nowicki, M., & Trigiano, R. (2022). Development and Characterization of 20 Genomic SSR Markers for Ornamental Cultivars of Weigela. Plants, 11(11), 1–12. https://doi.org/10.3390/plants11111444
Ismail, A., Abd El-kader, E., Eid, A., & Abdelsalam, E. (2022). Clonal Micropropagation of Purplish-Red Dragon Fruit (Selenicereus costaricensis) Newly Introduced To Egypt. Alfarama Journal of Basic & Applied Sciences, 4(2), 235–254. https://doi.org/10.21608/ajbas.2022.147236.1113
Izadi, S., Kunnummel, V., Steinkellner, H., Werner, S., & Castilho, A. (2023). Assessment of transient expression strategies to sialylate recombinant proteins in N. benthamiana. Biotechnology, 365, 48–53. https://doi.org/10.1016/j.jbiotec.2023.02.004
Kabir, M., Monirul, M., Das, P., & Mamun, A. (2024). In vitro regeneration of exotic fruit dragon (Hylocereus undatus) from stem fraction. Biological and Pharmaceutical Sciences Archive, 11(1), 40–47. https://doi.org/10.53771/ijbpsa.2024.7.1.0018
Lee, Y., & Chang, J. (2022). Development of an improved micropro-pagation protocol for red-fleshed pitaya ‘Da Hong’ with and without activated charcoal and plant growth regulator combinations. Horticulturae, 8(2), 1–17. https://doi.org/10.3390/horticulturae8020104
Maldonado-Cervantes, E., López-Palacios, C., Ramírez-Tobías, H. M., & Michel-Cuello, C. (2026). Evaluación morfo-química de frutos de pitaya de la Zona Media de San Luis Potosí. Ecosistemas y Recursos Agropecuarios, 13(2), e4309-e4309
Mállap, G., Vilca, N., Meléndez, J., Huaman, E., & Oliva, M. (2021). In vitro multiplication of yellow dragon fruit (Hylocereus megalanthus) from seedlings obtained in vitro. Agronomia Mesoamericana, 33(1), 1–13. https://doi.org/10.15517/am.v33i1.45472
Mustafa, S., & Saad, M. (2020). Propagation and Preservation of Hylocereus undatus via Tissue Culture Technique. Journal of Basic and Applied Scientific Research, 10(1), 7–12.
Neta, T., Santiago, D., Santos, W., Silva, J., Gallo, C., & Pinto, E. (2022). Micropropagation and acclimatization of two pitaya species under different concentrations of growth regulators and substrates. Research, Society and Development., 11(17), 1–15. https://doi.org/10.33448/rsd-v11i17.38756
Oo, K., Lynn, Z., Oo, K., Htwe, M., Htet, W., Soe, W., & Tun, W. (2023). In vitro Propagation of Three Pitaya Varieties (Hylocereus undatus, Hylocereus polyrhizus and Hylocereus megalanthus) with the Use of Different BAP Concentrations. Journal of Scientific and Innovative Research, 12(2), 33–39.
Pech, C., Salgado, P., Hernandez, A., & Muñoz, L. (2026). establishment and shoot development responses of Hylocereus undatus under plant growth regulator treatments. Crops, 6(1), 1–18. https://doi.org/10.3390/crops6010021
Reyes-Díaz, J. I., Nava-Becerril, R. M., & Arzate-Fernández, A. M. (2026). Respuesta morfogenética de Agave angustifolia al gradiente auxina-citocinina durante el desarrollo de embriones somáticos indirectos. Polibotánica, 61, 311-327.
Sabina, Y., Hasan, J., Hossain, S., Saha, S., & Khatun, F. (2022). Auxin and cytokinin synergism in micropropagation for mass production of Aloe vera. Computational Biology and Bionanotechnology, 103(3), 301–310. http://doi.org/10.5114/bta.2022.118672
Sarmiento, E., Luján, M., Porraz, M., Gutiérrez, F., & Santiz, J. (2025). Germinación de semillas y propagación in vitro de pitahaya (Hylocereus undatus). Biotecnia, 27, 1–7. https://doi.org/10.18633/biotecnia.v27.2366
Shah, K., Chen, J., Chen, J., & Qin, Y. (2023). Pitaya Nutrition , Biology , and Biotechnology : A Review. Molecular Sciences Review, 24(18), 1–28. https://doi.org/10.3390/ijms241813986
Sudiarta, I., Saputra, I., Singapurwa, N., Candra, I., & Semariyani, A. (2021). Ethanol and methanol levels of red dragon fruit wine (Selenicereus costaricensis) with the treatment of sugar and fermentation time. Journal of Physics: Conference Series, 1869(1), 1–5. https://doi.org/10.1088/1742-6596/1869/1/012032
Tineo, J. (2024). Efecto de diferentes dosis de ácido indolbutírico (aib) en el enraizamiento de pitahaya amarilla (Selenicereus megalanthus haw.) bajo condiciones de vivero en pucallpa [Universidad Nacional de Ucayali].
Trindade, A., Matias, P., Lacerda, V., Pestana, M., Marques, N., & Duarte, A. (2026). Pitaya as a New Alternative Crop for Iberian Peninsula : Cultural Practices. Plants, 15(5), 1–35. https://doi.org/10.3390/plants15050807
Trivellini, A., Lucchesini, M., Ferrante, A., Massa, D., Orlando, M., Incrocci, L., & Mensuali-Sodi, A. (2020). Pitaya, an attractive alternative crop for mediterranean region. Agronomy, 10(8), 1–19. https://doi.org/10.3390/agronomy10081065
Verona, A., Urcia, J., & Paucar, L. (2020). Pitahaya (Hylocereus spp.): Culture, physicochemical characteristics, nutritional composition, and bioactive compounds. Scientia Agropecuaria, 11(3), 439–453. https://doi.org/10.17268/sci.agropecu.2020.03.16